


המהפכה השקטה במסלולי האנרגיה של הגוף

הראיות החדשות על תרומת המסלול החמצוני גם במאמצים הקצרים והעצימים ביותר.


הגוף לא מחליף מערכות — הוא מנהל אספקת ATP בזמן אמת
ברגע שבו מרים משקולות אולימפי מנתק מוט כבד מן הקרקע, וברגע שבו רוכב עילית תוקף בעלייה, השריר ניצב בפני אותו אתגר: לחדש ATP בקצב שיאפשר לעמוד בדרישת העבודה. משך המאמץ, עוצמתו ואופי התנועה שונים מאוד, אך בשני המקרים התכווצות השריר תלויה באספקה רציפה של אדנוזין טריפוספט ATP.
מאגר ה־ATP הזמין בשריר קטן. לכן, עם תחילת המאמץ, קצב חידושו צריך לעלות במהירות. שלושה מסלולים מרכזיים משתתפים במשימה: מסלול הפוספאגן, הנשען בעיקר על פוספוקריאטין (PCr); גליקוליזה, המפיקה ATP מפירוק פחמימות; וזרחון חמצוני.במיטוכונדריה. קל לדמיין אותם כשלושה רצים במרוץ שליחים: הראשון מתחיל, השני מחליף אותו, והשלישי מגיע כשצריך להמשיך לאורך זמן. אלא שהדימוי הזה מטעה. המסלולים פועלים במקביל כמעט מן הרגע הראשון של המאמץ., ופעילות חמצונית קיימת בשריר גם לפני תחילת המאמץ. כאשר דרישת האנרגיה עולה, משתנים קצב הפעילות של המסלולים ושיעור תרומתם. השאלה הפיזיולוגית היא אפוא כמה ATP נדרש בכל רגע, ובאיזה קצב כל מסלול יכול לסייע בחידושו.

איור 1. תרומתם של שלושת מסלולי אספקת האנרגיה בשני סוגי מאמץ מרבי ברכיבה
האיור מציג את תרומתם היחסית של שלושת מסלולי אספקת האנרגיה לאספקת האנרגיה הכוללת במהלך (A) מאמץ רכיבה מרבי של 90 שניות, המבוצע בכל הכוח מתחילתו, ובמהלך (B) מאמץ רכיבה בעצימות קבועה עד תשישות, בעומס השווה ל־110% מהעומס התואם לצריכת החמצן המרבית (VO₂max). המשתתף היה טריאתלט בעל אימון סבולת, שצריכת החמצן המרבית שלו הייתה 64.9 מ״ל חמצן לק״ג לדקה. גירעון החמצן המצטבר במאמץ המרבי של 90 שניות היה 65.8 מ״ל לק״ג, ובמאמץ בעצימות הקבועה היה 69.2 מ״ל לק״ג. בתום המאמץ עד תשישות, בעצימויות ובמשכי המאמץ המוצגים, מוצתה הקיבולת האנאירובית — התרומה המשולבת של מסלול הפוספאגן ושל הגליקוליזה הלא־חמצונית. בשלב זה, ההספק בסיום המאמץ, המבטא את דרישת האנרגיה, היה שווה בקירוב לקצב אספקת האנרגיה באמצעות זרחון חמצוני. הנתונים לקוחים ממחקרם של Gastin ועמיתיו. האיור עובד מתוך הסקירה של Gastin. גרסה מונפשת של האיור זמינה בחומר המשלים של הסקירה שבה הוא מופיע, בקבצים 1a ו־1b.הגרסה המוצגת כאן עוצבה מחדש ותורגמה לעברית; העקומות שוחזרו בקירוב מהאיור המקורי ואינן נתוני הגלם של המחקר.

הספק גבוה מול קיבולת גבוהה
כדי להבין את ההבדלים בין המסלולים צריך להבחין בין הספק מטבולי — קצב חידוש ה־ATP — לבין קיבולת: הכמות הכוללת של אנרגיה שאפשר להפיק באמצעות המסלול בתנאים נתונים.
מסלול הפוספאגן מסוגל לחדש ATP במהירות גבוהה במיוחד. פוספוקריאטין מעביר קבוצת פוספט ל־ADP, וכך מסייע לשמר את זמינות ה־ATP כאשר דרישת העבודה מזנקת. המסלול חיוני בזינוק, בקפיצה, בספרינט קצר, בשינוי כיוון חד ובהרמה אולימפית. אולם מאגר ה־PCr מוגבל, וריכוזו יורד במהירות במאמץ עצים.
הגליקוליזה מפיקה ATP מפירוק גלוקוז וגליקוגן, ללא צורך ישיר בחמצן בתגובות המסלול עצמו. היא משתתפת באספקת האנרגיה כבר מתחילת המאמץ, ותרומתה עשויה להיות גדולה במיוחד כאשר נדרש הספק גבוה לאורך עשרות שניות. היא גם מספקת תוצרים להמשך חילוף החומרים החמצוני. לכן, פחמימות אינן “דלק אנאירובי” בלבד: הן מצע חשוב גם לייצור ATP במיטוכונדריה.
הזרחון החמצוני מאפשר חידוש ATP לאורך זמן, באמצעות חמצון מצעים שמקורם, בין היתר, בפחמימות ובשומנים. קצב חידוש ה־ATP המרבי שהוא יכול לספק נמוך מזה שמאפשרים המסלולים הלא־חמצוניים במאמץ קצר ומרבי, אך קיבולתו גבוהה בהרבה. פעילותו תלויה באספקת חמצן לשריר וביכולת השריר להשתמש בו.
זהו הבסיס להבדל בין הרמה אחת של מוט כבד לבין עלייה ממושכת על אופניים. בהרמה נדרש הספק גבוה מאוד בזמן קצר; בעלייה צריך לשמר הספק במשך דקות רבות. בשני המקרים פועלים אותם מסלולים, אך דרישות המשימה משנות את תרומתם. סקירה על מטבוליזם האנרגיה בשריר בזמן מאמץ מפרטת את יחסי הגומלין האלה ואת השפעת העצימות, האימון וזמינות הדלקים עליהם.
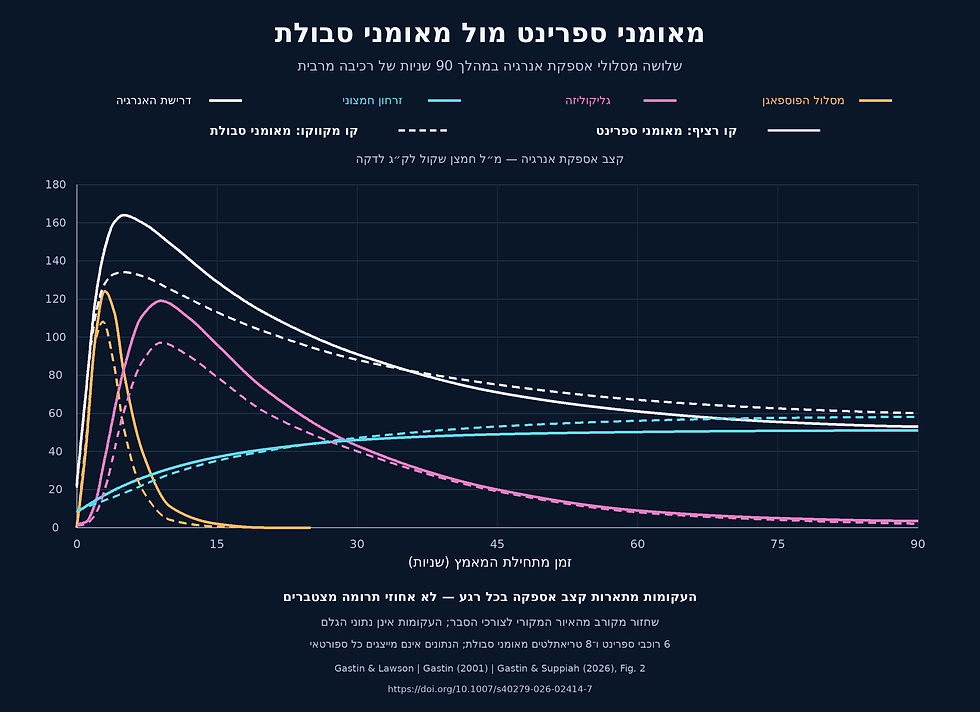
איור 2. השוואת מסלולי אספקת האנרגיה בין ספורטאים מאומני ספרינט לספורטאים מאומני סבולת
האיור מציג את תרומתם היחסית של שלושת מסלולי אספקת האנרגיה במהלך 90 שניות של רכיבה מרבית, המבוצעת בכל הכוח מתחילתה. ההשוואה נערכה בין שישה רוכבי אופניים מאומני ספרינט, שצריכת החמצן המרבית שלהם הייתה 58 מ״ל לק״ג לדקה, לבין שמונה טריאתלטים מאומני סבולת, שצריכת החמצן המרבית שלהם הייתה 65 מ״ל לק״ג לדקה. מקרא הגרסה המעובדת: קו רציף — מאומני ספרינט; קו מקווקו — מאומני סבולת. כתום — מסלול הפוספאגן (ATP–PCr); ורוד — גליקוליזה; תכלת — זרחון חמצוני; לבן — דרישת האנרגיה. הציר האופקי מציג זמן בשניות. הציר האנכי מציג את קצב אספקת האנרגיה ביחידות שוות־ערך לחמצן: מ״ל חמצן לק״ג לדקה. העקומות מתארות קצב אספקה לאורך המאמץ, ולא אחוזי תרומה מצטברים. הנתונים באיור המקורי לקוחים ממחקרם של Gastin ו־Lawson. האיור המקורי עובד מתוך הסקירה של Gastin. גרסה מונפשת זמינה בקובץ המשלים מספר 2 של הסקירה שבה מופיע האיור. הגרסה המוצגת כאן עוצבה מחדש ותורגמה לעברית; העקומות שוחזרו בקירוב מהאיור המקורי ואינן נתוני הגלם של המחקר.

גם ספרינט מפעיל את המסלול החמצוני
המערכת החמצונית אינה ממתינה כמה דקות לפני שהיא מגיבה למאמץ. צריכת החמצן עולה עם תחילת הפעילות, אך העלייה אינה מיידית במלואה: נדרש זמן להגדיל את קצב הייצור החמצוני בהתאם לדרישה החדשה. התגובה הזאת מתוארת באמצעות קינטיקת צריכת החמצן, או קינטיקת VO₂. לקצב התגובה יש גם משמעות בתכנון אימונים, כפי שמתואר בסקירה העוסקת בהתאמת אימוני אינטרוולים לקינטיקת צריכת החמצן. חשוב להבחין בין צריכת החמצן הנמדדת בריאות לבין השימוש בחמצן בשריר. המדידה הנשימתית מסייעת להעריך את התגובה החמצונית למאמץ, אך אינה מדידה ישירה של ייצור ATP בכל סיב ובכל רגע.

איור 4. התרומה החמצונית היחסית לאספקת האנרגיה הכוללת במאמצים מרביים שמשכם שונה
האיור המקורי מציג 309 נקודות נתונים ממאמצים מרביים שנמשכו 6–841 שניות. כל נקודה מייצגת את התרומה החמצונית הממוצעת שדווחה במחקר עבור מאמץ מרבי במשך מסוים. הקו השחור הרציף באיור המקורי מציג את תחזית המודל המעריכי הדו־שלבי. הקווים המנוקדים הפנימיים מציינים רווח סמך של 95% (CI), והקווים המנוקדים החיצוניים מציינים את גבולות שגיאת הניבוי ברמת 95% (PE). מקדם ההסבר של המודל היה R² = 0.933. רוחב רווח הסמך נע בין ±0.1 ל־±6.0 נקודות אחוז, ושגיאת הניבוי נעה בין ±12.6 ל־±13.9 נקודות אחוז. בגרסה המונפשת: הקו בתכלת מציג את עקומת המודל; האזור המוצלל הפנימי מציג קירוב של רווח הסמך, והאזור החיצוני מציג קירוב של טווח הניבוי. נקודות המחקרים אינן מוצגות. כל משך בציר האופקי מייצג מאמץ מרבי נפרד. התרומה החמצונית היא שיעור מצטבר מכלל האנרגיה לאורך אותו מאמץ, ולא שיעור אספקת האנרגיה ברגע מסוים. מקור: Gastin ו־Suppiah, 2026 — איור 4.
במאמץ קצר ומרבי, המסלולים הלא־חמצוניים מספקים את רוב האנרגיה. עם זאת, כבר במאמץ כזה קיימת תרומה חמצונית. סקירה שיטתית שפורסמה ב־2026 וכללה 102 מחקרים ו־311 נקודות נתונים על מאמצים מרביים רציפים. מתוך הנתונים נבנה מודל להערכת התרומה היחסית:

הטבלה מציגה אומדנים מעוגלים מתוך טבלה 5 בסקירה. אלה שיעורים מצטברים מתחילת המאמץ ועד סופו. התרומה הלא־חמצונית כוללת יחד את מסלול הפוספאגן ואת התרומה הגליקוליטית הלא־חמצונית. כך, האומדן של 25% במאמץ בן 30 שניות מתייחס לרבע מכלל האנרגיה שנדרשה לאורך המאמץ. הוא אינו אומר שבשנייה ה־30 המסלול החמצוני מספק בדיוק רבע מקצב אספקת האנרגיה באותו רגע.

איור 5. התרומה החמצונית היחסית לאספקת האנרגיה הכוללת לפי שיטת המדידה וההערכה
האיור המקורי משווה בין שיטות להערכת התרומה החמצונית במהלך מאמצים מרביים שמשכם שונה. מספר נקודות הנתונים וטווחי משך המאמץ בכל שיטה היו:
מדידות ישירות: שתי נקודות נתונים; משך המאמץ: 10–20 שניות.
גירעון חמצן: 103 נקודות נתונים; משך המאמץ: 6–490 שניות; R² = 0.897. רווח סמך של 95%: ±0.1 עד ±5.2 נקודות אחוז; שגיאת ניבוי: ±12.2 עד ±13.2 נקודות אחוז.
שיטות משולבות: 87 נקודות נתונים; משך המאמץ: 10–402 שניות; R² = 0.956. רווח סמך של 95%: ±0.1 עד ±5.3 נקודות אחוז; שגיאת ניבוי: ±11.5 נקודות אחוז.
מידול תאורטי: 109 נקודות נתונים; משך המאמץ: 6–486 שניות; R² = 0.989. רווח סמך של 95%: ±0.1 עד ±6.3 נקודות אחוז; שגיאת ניבוי: ±7.5 עד ±8.7 נקודות אחוז.
הקווים הרציפים באיור המקורי מציגים את תחזיות המודל המעריכי הדו־שלבי, והקווים המנוקדים מציגים את גבולות שגיאת הניבוי ברמת 95%. עקומת גירעון החמצן הייתה שונה באופן מובהק מהעקומות של שתי שיטות ההערכה האחרות (p = 0.001). בגרסה המונפשת: כתום — גירעון חמצן; תכלת — שיטות משולבות; סגול — מידול תאורטי. העקומות וטווחי הניבוי מוצגים בקירוב, ללא נקודות הנתונים המקוריות. רווחי הסמך אינם מוצגים. מקור: Gastin ו־Suppiah, 2026 — איור 5.
גם גבולות הנתונים חשובים: הסקירה פורסמה ב־2026, אך חיפוש המחקרים שלה כיסה פרסומים עד ינואר 2020. המשתתפים היו בעיקר גברים צעירים, והמחקרים השתמשו בשיטות הערכה שונות. לכן, האחוזים ממחישים דפוס כללי ואינם ערכים קבועים לכל ספורטאי או ענף.
ובכל זאת, התמונה ברורה: ספרינט של עשר שניות כולל גם תרומה חמצונית; במאמץ מרבי של חצי דקה תרומתה כבר משמעותית; ובמאמץ מרבי של דקה, המודל מעריך שהיא מספקת יותר משתי חמישיות מהאנרגיה הכוללת.

מה באמת קורה סביב 79 שניות?
עפ״י הסקירה של Gastin ו־Suppiah נבנה מודל המעריך כי במאמץ מרבי רציף שנמשך כ־78.6 שניות, התרומה החמצונית והלא־חמצונית המצטברות שוות בקירוב. כלומר, כל אחת מהן מספקת כמחצית מהאנרגיה הכוללת שנדרשה מתחילת המאמץ ועד סופו. זו אינה נקודת החלפת מערכות. גם קודם לכן מתקיים ייצור ATP חמצוני, וגם במאמצים ארוכים יותר המסלולים הלא־חמצוניים ממשיכים לתרום. יתרה מכך, נקודת השוויון המצטברת אינה בהכרח הרגע שבו קצב אספקת האנרגיה החמצוני עולה על הקצב הלא־חמצוני.
בסקירה נמצאו הבדלים קטנים אך מובהקים בין העקומות לפי שיטת ההערכה ואסטרטגיית הקצב. לעומת זאת, לא נמצאו הבדלים מובהקים בין עקומות הריצה והרכיבה או בין קבוצות סטטוס האימון שנבחנו. אין להסיק מכך שכל הספורטאים מגיבים באופן זהה; המשמעות היא שההשוואות בסקירה לא הדגימו הבדלים כאלה. במאמץ מרבי של 90 שניות, למשל, המודל מעריך תרומה חמצונית מצטברת של כ־54%, לצד תרומה לא־חמצונית של כ־46%. אלה שתי תרומות גדולות, שכל אחת מהן חיונית להבנת הביצוע.

איור 6. התרומה החמצונית לפי אסטרטגיית הקצב
התרומה היחסית של המסלול החמצוני לאספקת האנרגיה הכוללת באסטרטגיות קצב שונות של מאמץ מרבי:
מאמץ מרבי מתחילתו (all-out): n = 103; טווח משכים: 6–450 שניות; R² = 0.888; רווח סמך של 95%: ±0.1 עד ±11.9 נקודות אחוז; שגיאת ניבוי: ±14.9 עד ±19.8 נקודות אחוז.
קצב בבחירה עצמית: n = 109; טווח משכים: 6–486 שניות; R² = 0.954; רווח סמך של 95%: ±0.1 עד ±3.3 נקודות אחוז; שגיאת ניבוי: ±10.8 עד ±11.2 נקודות אחוז.
קצב קבוע: n = 87; טווח משכים: 10–490 שניות; R² = 0.867; רווח סמך של 95%: ±0.1 עד ±3.5 נקודות אחוז; שגיאת ניבוי: ±11.9 עד ±13.9 נקודות אחוז.
הקווים הרציפים מייצגים את תחזיות המודל המעריכי הדו־שלבי, והקווים המנוקדים מציינים את שגיאת הניבוי ברמת 95%. עקומת הקצב הקבוע נמצאה שונה באופן מובהק סטטיסטית (p = 0.012). מקור: Gastin ו־Suppiah — איור 6 במחקר המקורי.

איור 7. התרומה החמצונית לפי מצב האימון
התרומה היחסית של המסלול החמצוני לאספקת האנרגיה הכוללת במאמצים מרביים, לפי מצב האימון:
מאומני סבולת: n = 15; טווח משכים: 45–1686 שניות; R² = 0.990; רווח סמך של 95%: ±0.2 עד ±2.5 נקודות אחוז; שגיאת ניבוי: ±3.0 עד ±3.9 נקודות אחוז.
מאומני ספרינט: n = 24; טווח משכים: 9–340 שניות; R² = 0.966; רווח סמך של 95%: ±0.5 עד ±10.8 נקודות אחוז; שגיאת ניבוי: ±11.0 עד ±15.4 נקודות אחוז.
לא מאומנים: n = 57; טווח משכים: 10–490 שניות; R² = 0.912; רווח סמך של 95%: ±0.3 עד ±10.9 נקודות אחוז; שגיאת ניבוי: ±15.7 עד ±19.1 נקודות אחוז.
הקווים הרציפים מייצגים את תחזיות המודל המעריכי הדו־שלבי, והקווים המנוקדים מציינים את שגיאת הניבוי ברמת 95%. לא נמצא הבדל מובהק סטטיסטית בין העקומות (p = 0.355). ממצא זה אינו מעיד בהכרח על יכולות ביצוע או על הסתגלויות פיזיולוגיות זהות בין הקבוצות. מקור: Gastin ו־Suppiah — איור 7 במחקר המקורי.

איור 8:
התרומה היחסית של המסלול החמצוני לאספקת האנרגיה הכוללת במאמצי רכיבה מרביים (n = 134; טווח: 6–490 שניות; R² = 0.908; רווח סמך של 95%: ±0.1 עד ±9.0 נקודות אחוז; שגיאת ניבוי: ±13.8 עד ±16.5 נקודות אחוז) ובמאמצי ריצה מרביים (n = 101; טווח: 6–486 שניות; R² = 0.966; רווח סמך של 95%: ±0.1 עד ±5.9 נקודות אחוז; שגיאת ניבוי: ±9.7 עד ±11.4 נקודות אחוז). הקווים הרציפים באיור המקורי מייצגים מודל מעריכי דו־שלבי, והקווים המנוקדים מייצגים את שגיאת הניבוי ברמת 95%. לא נמצא הבדל מובהק סטטיסטית בין העקומות (p = 0.793). PMC הבהרה לגרסאות המונפשות: העקומות וטווחי הניבוי שוחזרו בקירוב חזותי; הם אינם שחזור מספרי מדויק של המודל המקורי. ההנפשה חושפת בהדרגה תרומות מצטברות ממאמצים שמשכם שונה.

לקטט אינו “האויב”, אלא הוא חלק מאספקת האנרגיה
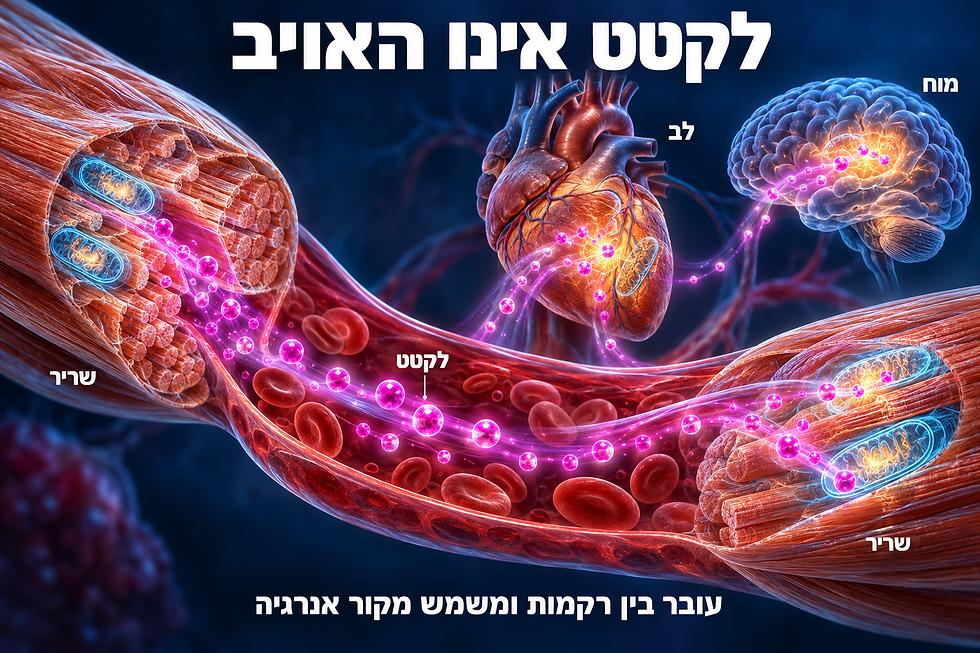
הגליקוליזה הלא־חמצונית מזוהה לעיתים קרובות עם הצטברות “חומצת חלב”, אך מדובר בתיאור מיושן ופשטני. בתנאים פיזיולוגיים, המולקולה שנמדדת בדרך כלל היא לקטט. כיום היא אינה נתפסת רק כתוצר לוואי של מטבוליזם עצים, אלא גם כמולקולה הניתנת להובלה, לחמצון ולשימוש כמקור אנרגיה ברקמות שונות, ובהן שריר פעיל, לב ומוח. רעיון שאטל הלקטט מתאר את החיבור בין תאים ורקמות שמייצרים לקטט לבין אלה שמשתמשים בו. הלב, למשל, מסוגל להשתמש בלקטט כמצע אנרגטי משמעותי בזמן מאמץ.

אין פירוש הדבר שלקטט או השינויים הנלווים לגליקוליזה אינם רלוונטיים לעייפות. במאמץ עצים נוצרים שינויים משמעותיים בסביבה המטבולית של השריר: פירוק PCr, עלייה בפוספט אנאורגני, שינויים בסביבה היונית ובחומציות, ושינויים בהפעלת השריר ובמנגנון הכיווץ. אולם הצגת הלקטט כגורם יחיד לעייפות או כפסולת שיש “לפנות” ממנה את השריר אינה תואמת את ההבנה העכשווית של מטבוליזם במאמץ. ריכוז לקטט גבוה יכול ללוות את המאמץ, אך אינו מזהה לבדו את הגורם לירידה בביצוע. גם תחושת הצריבה אינה מדד לאיכות האימון. היא אינה מספרת כמה כוח הופק, עד כמה הטכניקה נשמרה או אם נוצר הגירוי המתאים למטרה. כדי להעריך את האימון צריך להתבונן גם בביצוע עצמו.
ההתאוששות מחברת בין המסלולים
הקשר בין המסלולים נמשך גם אחרי שהמאמץ מסתיים. חידוש מאגרי ה־PCr נשען בעיקר על ATP שמופק בחילוף חומרים חמצוני. כלומר, היכולת לבצע שוב מאמץ מתפרץ קשורה גם לתהליכים המאפשרים להתאושש ממנו.
מחקר על מאמצי ספרינט חוזרים הדגים את חשיבות חידוש ה־PCr ואת תרומת המטבוליזם החמצוני לאספקת האנרגיה במאמצים חוזרים. לכן, שני אימונים הכוללים ספרינטים באותו אורך עשויים להציב דרישות שונות מאוד אם זמני המנוחה ביניהם שונים. מנוחה ארוכה יותר עשויה לאפשר שחזור טוב יותר של ההספק. מנוחה קצרה משאירה את המתאמן במצב של התאוששות חלקית ומשנה את התנאים שבהם מתחיל המאמץ הבא. חלוקת האנרגיה בספרינט הראשון אינה בהכרח זו שבספרינט השישי. מכאן גם שאין להעתיק את אחוזי הטבלה, המתייחסים למאמץ יחיד ורציף, ישירות לאימון אינטרוולים או לסדרת סטים. כדי להבין אימון כזה צריך להביא בחשבון את רצף המאמצים ואת ההתאוששות ביניהם.
לתכנן לפי המטרה ולבחון את הביצוע
העקרונות הפיזיולוגיים האלה יכולים לסייע בתכנון אימונים. היישומים הבאים נגזרים מהם, ואינם רשימת פרוטוקולים שנבדקו בסקירה עצמה.
כאשר המטרה היא לפתח מהירות או הספק מרביים, חשוב לאפשר למתאמן לבצע חזרות באיכות גבוהה. אם המהירות, גובה הקפיצה או ההספק יורדים במידה ניכרת, קיצור המנוחה עלול להרחיק את האימון ממטרתו. תחושת קושי גדולה יותר אינה מבטיחה גירוי טוב יותר לפיתוח מהירות.
כאשר המטרה היא לשפר יכולת לבצע מאמצים עצימים חוזרים, התאוששות חלקית יכולה להיות מרכיב מכוון באימון.
כאן חשוב לעקוב אחר הירידה בביצוע לאורך החזרות: האם היא תואמת את דרישות המשימה, והאם המתאמן עדיין שומר על איכות התנועה הנדרשת? באינטרוולים שמטרתם להעמיס על המערכת החמצונית, משך החזרה לבדו אינו מספיק לתיאור האימון. גם העצימות, משך ההתאוששות, אופייה ומספר החזרות משפיעים על התגובה. אין הכרח שכל חזרה תהיה מאמץ מרבי; פתיחה אגרסיבית מדי עלולה לפגוע ביכולת לצבור עבודה בעצימות ובאיכות הרצויות.
אצל מרים משקולות, זמינות PCr והתאוששות בין ניסיונות חשובות לצד הטכניקה וההפעלה העצבית־שרירית. אצל רוכב, יכולת חמצונית גבוהה תומכת בשימור ההספק, והמסלולים הלא־חמצוניים מסייעים בהתקפות, בהאצות ובספרינט הסיום. גם לתזונה ולזמינות המצעים יש מקום בתמונה. קריאטין יכול להגדיל את מאגרי הקריאטין התוך־שריריים ולתמוך בחלק מן הביצועים הקצרים והעצימים, במיוחד במאמצים חוזרים. זו דוגמה להשפעה על זמינות האנרגיה, לצד חשיבותם של תכנון העומס, המנוחה ויכולת הספורטאי.

מבחן ביצוע אינו מדידה של מסלול יחיד
אותו עיקרון חל גם על הערכת מתאמנים. מבחן וינגייט בן 30 שניות יכול לספק מידע על הספק שיא, הספק ממוצע ועבודה כוללת. הכינוי “מבחן אנאירובי” אינו הופך אותו למדידה מבודדת של אספקת אנרגיה לא־חמצונית: לאורך המבחן קיימת גם תרומה חמצונית. בדומה לכך, תוצאה בספרינט קצר מושפעת מזמינות אנרגיה, אך גם מכוח, מטכניקה, מתיאום ומקצב פיתוח הכוח. אפשר להשתמש במבחן למעקב אחר ביצועים, בתנאים עקביים, בלי לייחס לכל שינוי בתוצאה הסבר מטבולי יחיד. ההבחנה הזאת חשובה למאמן: שיפור בתוצאה הוא מידע שימושי, אך כדי להבין מדוע התרחש ומה כדאי לעשות בהמשך, צריך לבחון אותו לצד מאפייני האימון והמתאמן.
האימון הבא מתחיל בשאלה מדויקת יותר
המושגים “אירובי” ו“אנאירובי” יכולים לשמש קיצור נוח, אך הם אינם מספיקים כדי לתאר את דרישות האימון. צריך לשאול איזה הספק נדרש, לכמה זמן, כמה פעמים צריך לשחזר אותו ומה מאפשרת המנוחה שבין המאמצים. מרים המשקולות והרוכב מציבים דרישות שונות בפני אותם מסלולים משולבים של אספקת ATP. התכנון המקצועי מתחיל בהבנת הדרישות האלה וממשיך בבדיקה אם המתאמן אכן מצליח לעמוד בהן.
האימון נבחן ביכולת שהוא נועד לפתח ובאיכות שבה היא תורגלה. הבנת אספקת האנרגיה מאפשרת לתכנן את המאמץ ואת המנוחה כך שישרתו את המטרה הזאת.
להבין את המאמץ, לדייק את האימון
נחזור לרגע שבו המוט מתנתק מן הקרקע ולרגע שבו הרוכב תוקף בעלייה. בשניהם, הביצוע תלוי ביכולת לחדש ATP בקצב הנדרש. אלא שההרמה מסתיימת בתוך שניות, ואילו הרוכב צריך להמשיך לדווש גם אחרי ההתקפה. ההבדל הזה קובע מה נדרש מהשריר — וכיצד כדאי לאמן אותו. כאן נבחנת התועלת של הידע הפיזיולוגי. כמה מנוחה תאפשר לשמור על מהירות? מתי התאוששות חלקית משרתת את מטרת האימון, ומתי היא פוגעת בה? האם החזרה הבאה עדיין מפתחת את היכולת שלשמה התחלנו להתאמן? אלה החלטות שמשפיעות על מה שמתרחש בפועל בכל סט, ספרינט ואינטרוול.
הגוף אינו מחכה שנחליט אם האימון “אירובי” או “אנאירובי”. הוא מתאים את אספקת האנרגיה לדרישה שהצבנו בפניו. האחריות שלנו היא לדייק בדרישה הזאת, ולבדוק אם הביצוע נשאר נאמן למטרה גם כשהעייפות מצטברת.
קל לגרום למתאמן להתעייף. האתגר המקצועי הוא לדעת איזו יכולת הוא מפתח בזמן הזה — ואם העייפות כבר מונעת ממנו לתרגל אותה.

אם המאמר עורר בכם עניין, חידש לכם, או גרם לכם לחשוב אחרת ואתם מאמינים שיותר אנשים צריכים להכיר את המאמר הזה, אשמח מאוד אם תשתפו את המאמר. כל שיתוף מסייע להנגיש מידע מדעי עדכני ואמין לקהל רחב יותר ומאפשר לבחון מחדש את אחד הנושאים החשובים ביותר במדעי האימון.


תגובות